IF=22.7|源井生物助力解析:DFCP1 内质网微域介导溶酶体膜修复与溶噬代偿转换机制
文献速览
溶酶体膜损伤是感染及神经退行性疾病引发细胞病理损伤的重要诱因,但内质网调控溶酶体膜修复的上游信号尚不清晰。挪威奥斯陆大学团队于《Nature Cell Biology》发表研究证实,DFCP1阳性内质网微域是溶酶体膜修复的保守早期应答单元。溶酶体损伤释放Ca²+后,DFCP1在PIK3C3-PI3P调控下被招募至内质网-溶酶体接触位点,富集脂质通道VPS13C,维持溶酶体膜完整性。DFCP1缺失将造成修复受阻,细胞代偿启动溶噬,同时抵抗李斯特菌液泡损伤的能力减弱。本研究所用LAMP1-HaloTag示踪质粒由源井生物提供,该工具可实现活细胞溶酶体动态示踪,为解析上述损伤修复过程提供关键实验支撑。
研究路线
- 表型初筛:LLOMe试剂构建溶酶体损伤模型,抑制剂与敲低实验,验证PIK3C3-PI3P参与溶酶体膜修复。
- 上游机制解析:利用钙螯合剂、通道与激酶抑制剂干预,证实 Ca²+-ULK1调控内质网 PI3P 生成。
- 蛋白招募条件探究:活细胞超分辨成像结合DFCP1突变体,确定DFCP1募集依赖ER结合、PI3P结合及VAP蛋白。
- 蛋白功能验证:DFCP1敲除及ATP酶突变回补,证实ATP酶活性为溶酶体修复所必需。
- 下游通路解析:时序成像+上位遗传实验,证明DFCP1促使VPS13C在损伤位点局灶富集。
- 代偿与病理验证:Lysoflux检测溶噬代偿效应;李斯特菌感染,验证通路病理生理功能。
- 构建分子模型:整合全部实验,建立DFCP1-内质网微域介导溶酶体膜修复的工作模型。
主要结果
1. Ca²+-ULK1-PIK3C3 轴调控内质网 PI3P 生成,参与溶酶体膜修复
溶酶体损伤释放 Ca²+,经 ULK1 复合体激活 PIK3C3,在邻近溶酶体的内质网微域生成 PI3P;抑制剂与 siRNA 敲低结合 LysoTracker 检测,证实 PIK3C3 是溶酶体膜修复的必需因子。
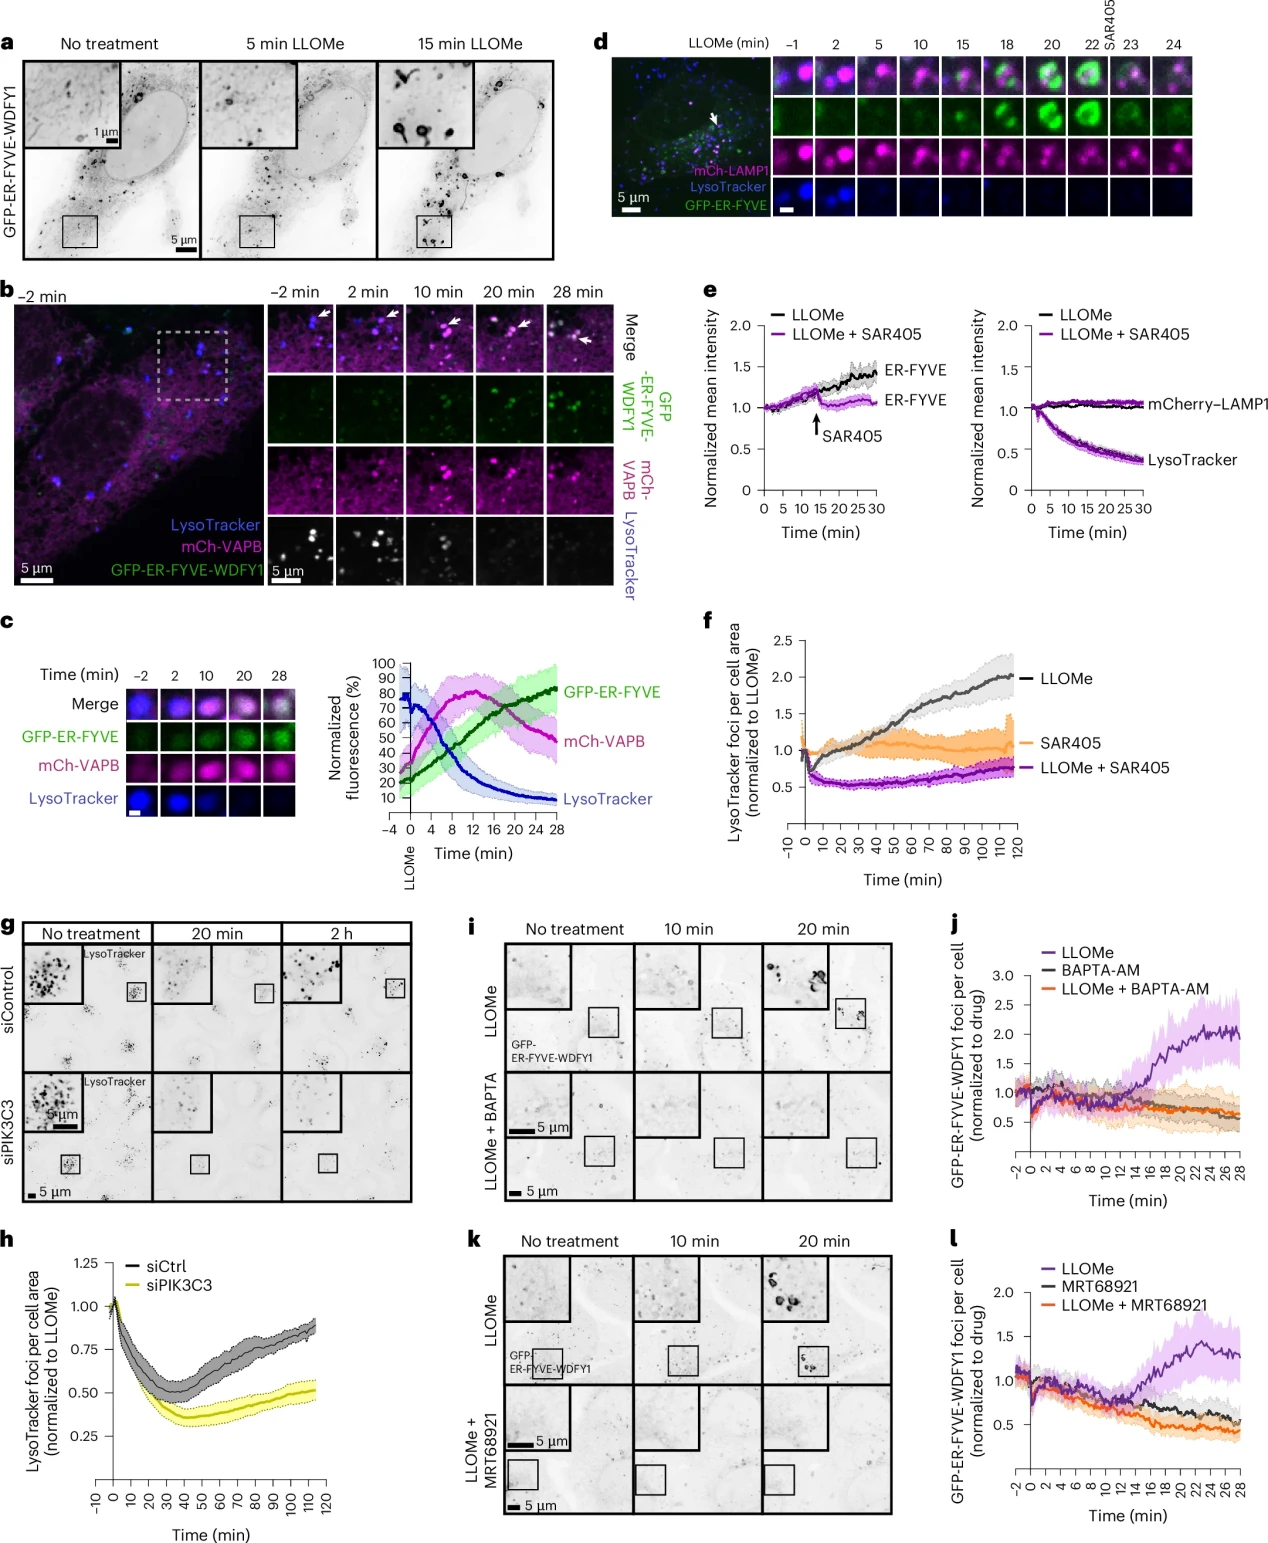
图1.溶酶体损伤诱发Ca2+ 以及 ULK1 依赖的 PIK3C3 激活,内质网微域形成 PI3P 是溶酶体修复的必要条件
2.DFCP1 向损伤位点的募集依赖 PI3P 、内质网结合域与 VAP 蛋白
溶酶体受损后,DFCP1 快速富集在溶酶体附近的内质网微域,形成动态膜接触结构。缺失内质网结合区、PI3P 结合 FYVE 结构域,或敲除 VAP 家族蛋白,都会阻碍 DFCP1 在损伤位点的有效募集。
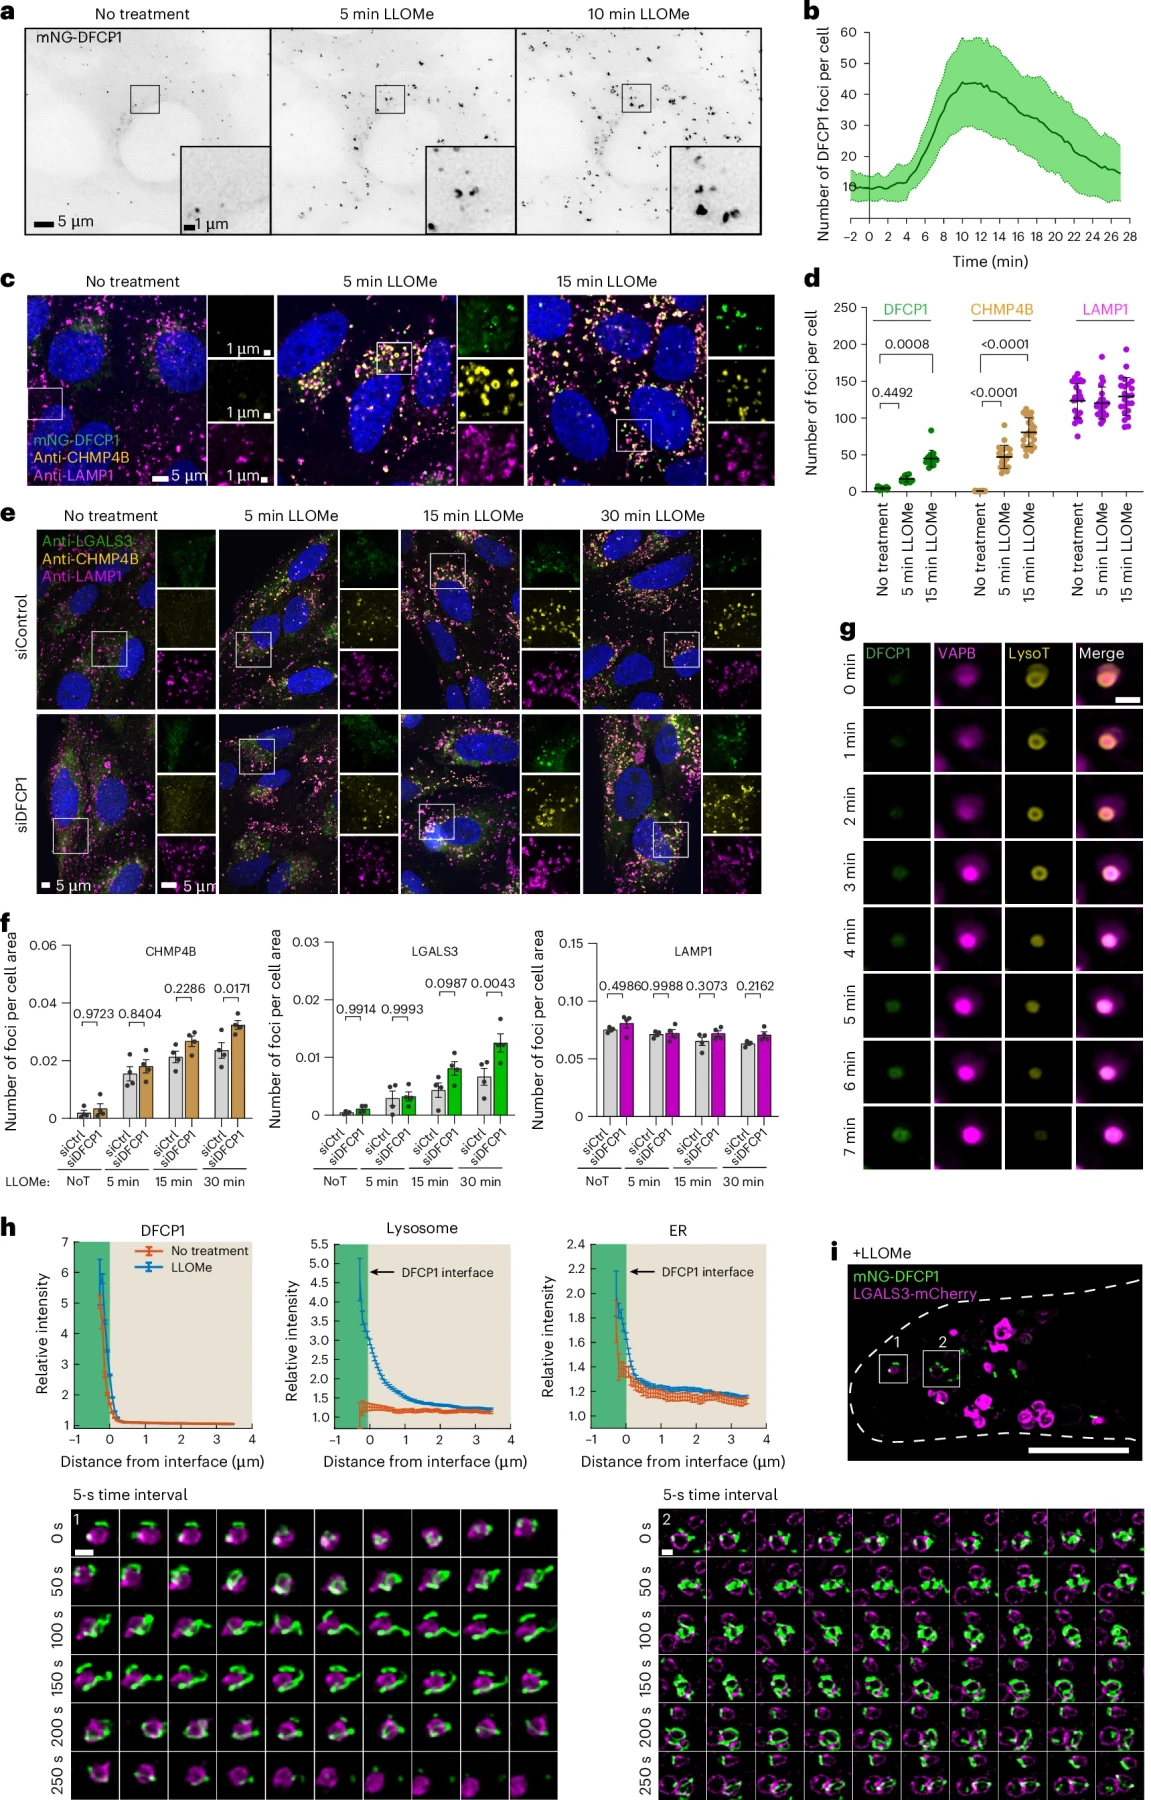
图2. 含有DFCP1的内质网微结构域对溶酶体膜损伤有反应
3. 内质网结合与 VAP 家族蛋白为 DFCP1 损伤应答的必要条件
冷冻电镜断层成像显示,溶酶体损伤后内质网与溶酶体之间的接触增加。结合活细胞成像结果,研究发现 DFCP1 会在受损溶酶体邻近的内质网微域富集。进一步实验表明,VAP 家族蛋白及 DFCP1 的内质网结合能力对其损伤应答至关重要。
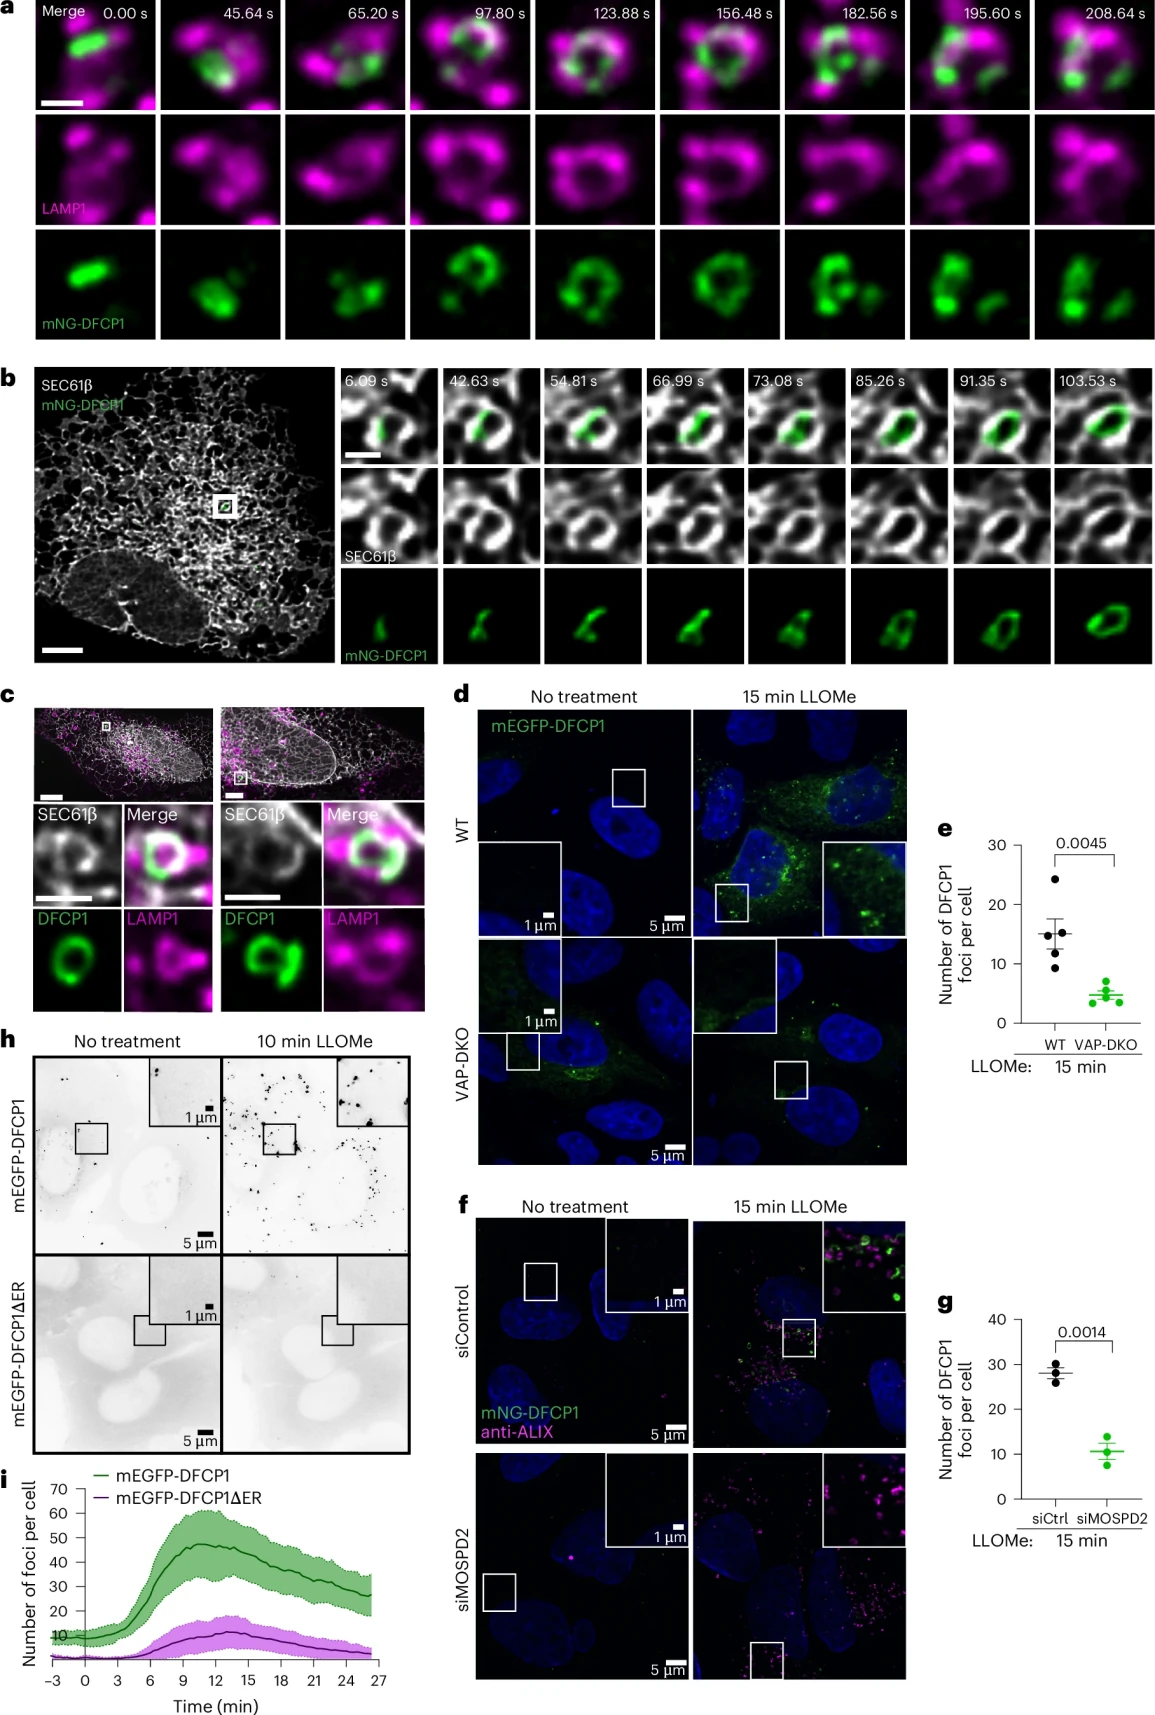
图3:内质网结合和VAP家族蛋白是DFCP1对溶酶体损伤反应的必要条件
4.Ca²+ULK1PI3P 信号轴触发 DFCP1 响应溶酶体损伤
溶酶体损伤通过 TRPML1 通道释放 Ca²+,经 ULK1-PIK3C3 通路生成 PI3P,进而招募 DFCP1。该过程高度依赖 Ca²+、DFCP1 的内质网结合及 PI3P 结合结构域,且与 Ca²+不敏感的 ESCRT-CHMP4B 招募存在明显区别。
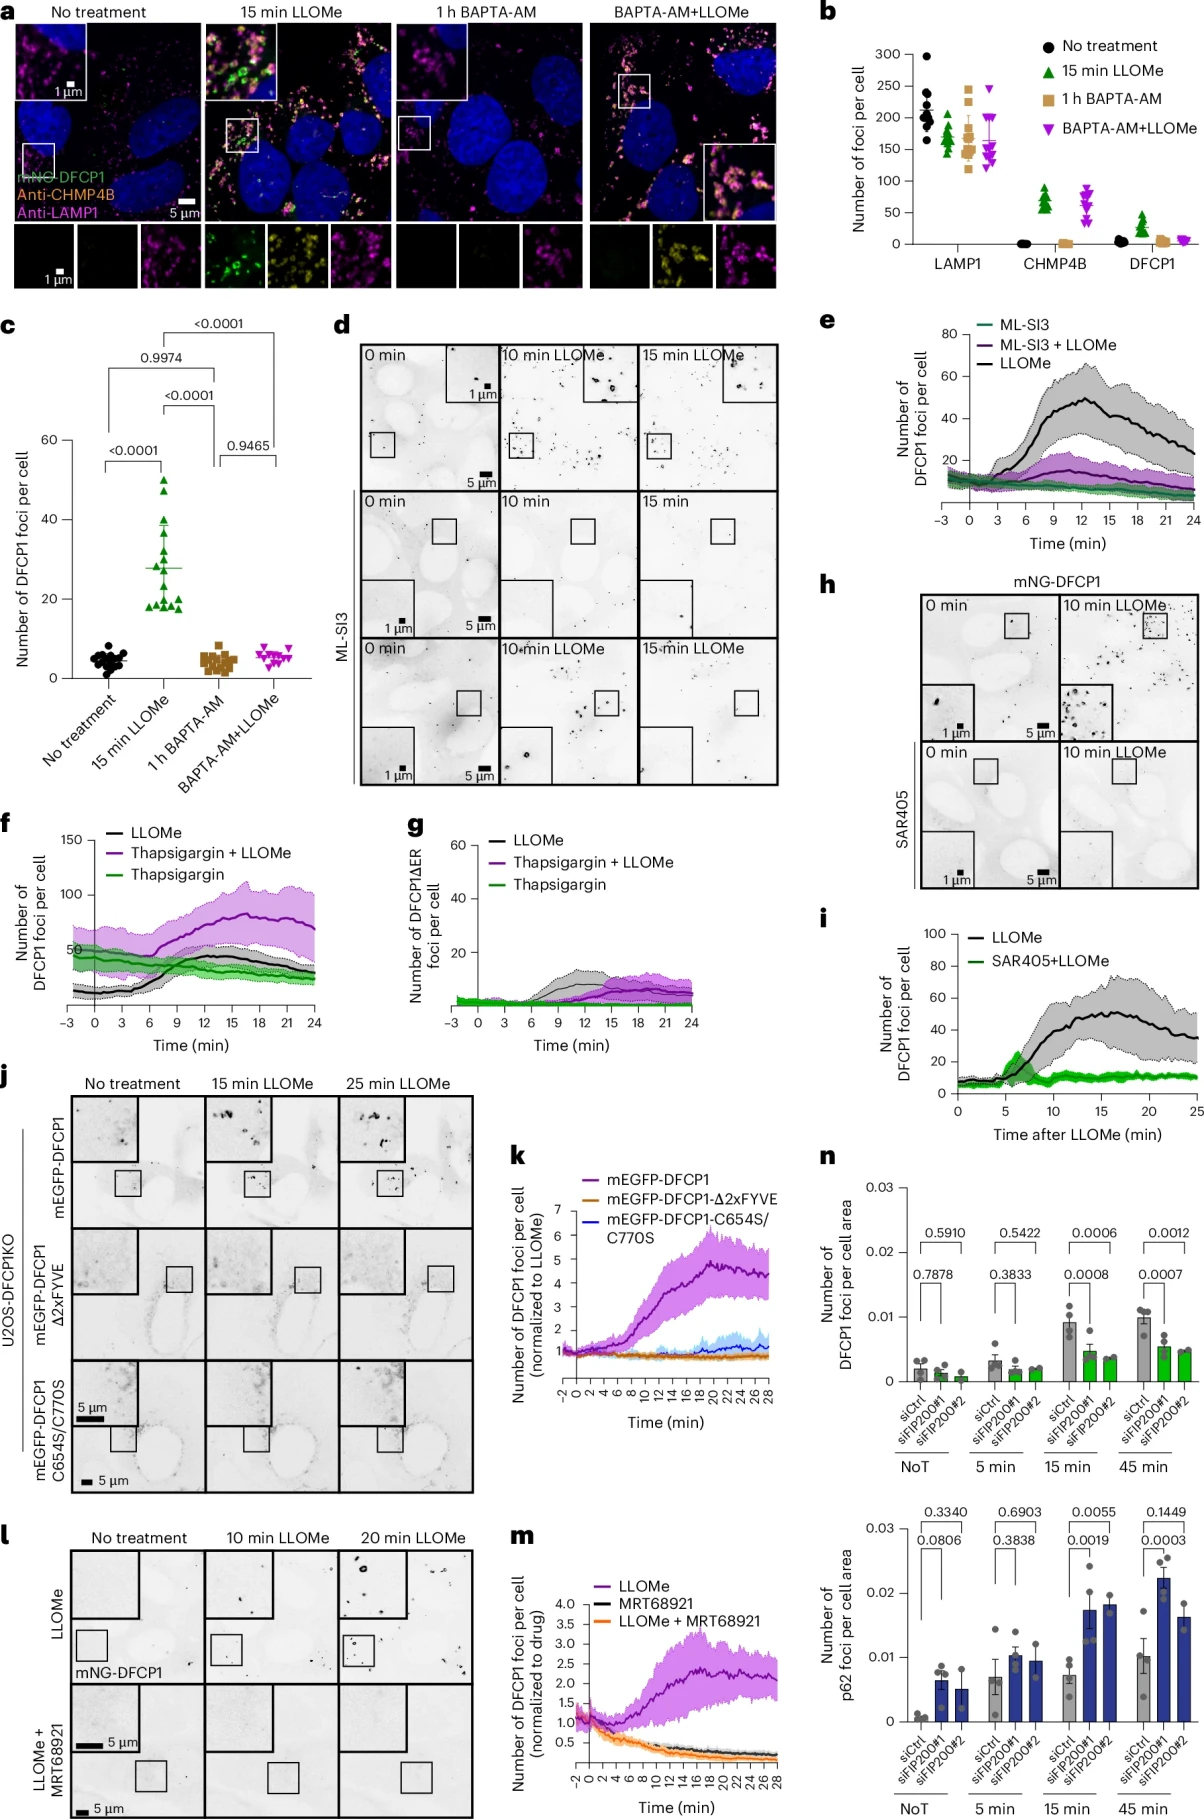
图4. DFCP1 对溶酶体损伤的应答依赖 Ca²+、ULK1 以及 PI3P
5.DFCP1 介导溶酶体膜修复,功能依赖内质网结合与 ATP 酶活性
LysoTracker 恢复实验与 LGALS3 染色证实 DFCP1 敲除细胞存在溶酶体修复缺陷。内质网结合域缺失、ATP 酶失活突变体均无法回补修复表型;FRAP 实验证明 ATP 酶活性调控 DFCP1 动态周转,DFCP1 发挥修复功能需要内质网结合能力与 ATP 水解活性。
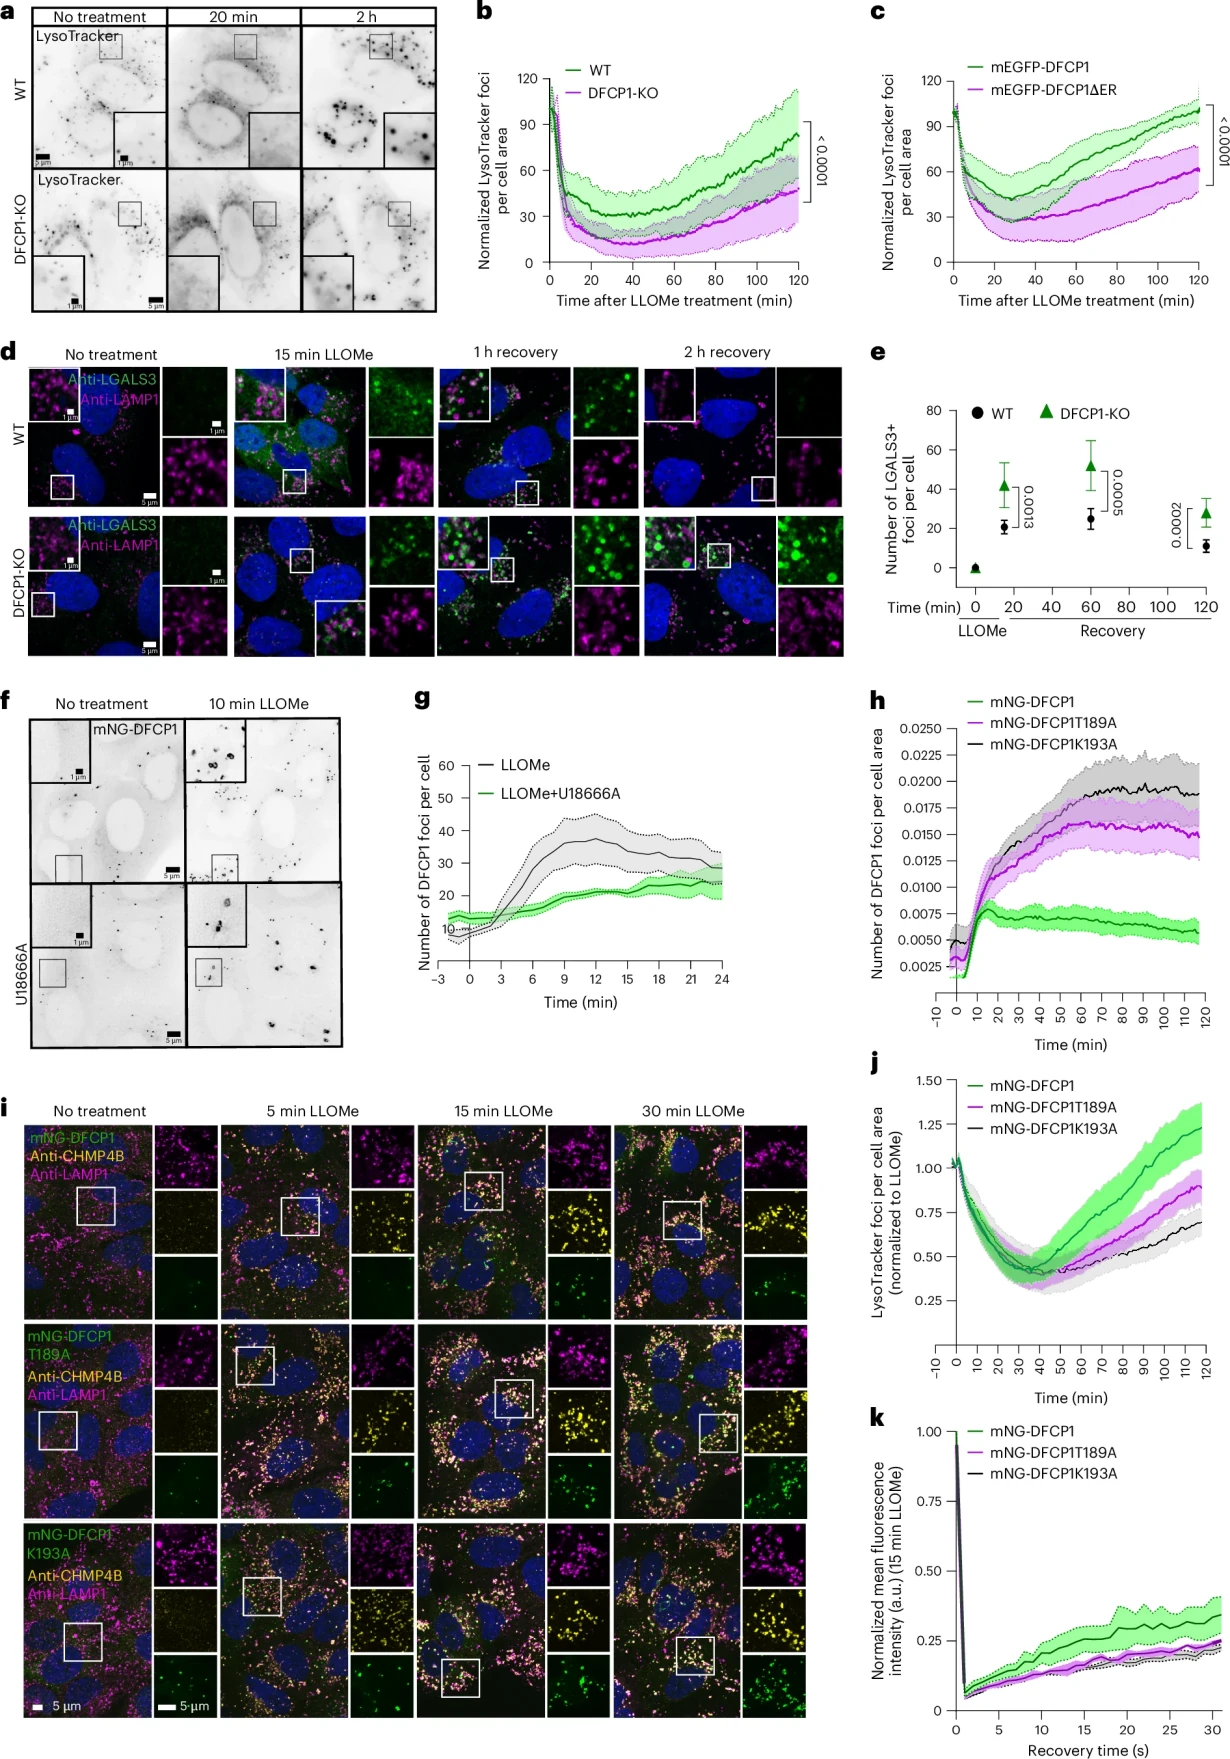
图5 .DFCP1 介导溶酶体膜修复依赖 ATP 酶活性
6. DFCP1 介导脂质通道 VPS13C 在损伤位点局灶性聚集
时序活细胞成像显示 VPS13C 早于 DFCP1 被招募至受损溶酶体周边。DFCP1 缺失后 VPS13C 呈弥散分布,无法组装形成局灶微域,进而阻碍内质网向溶酶体的脂质转运过程。
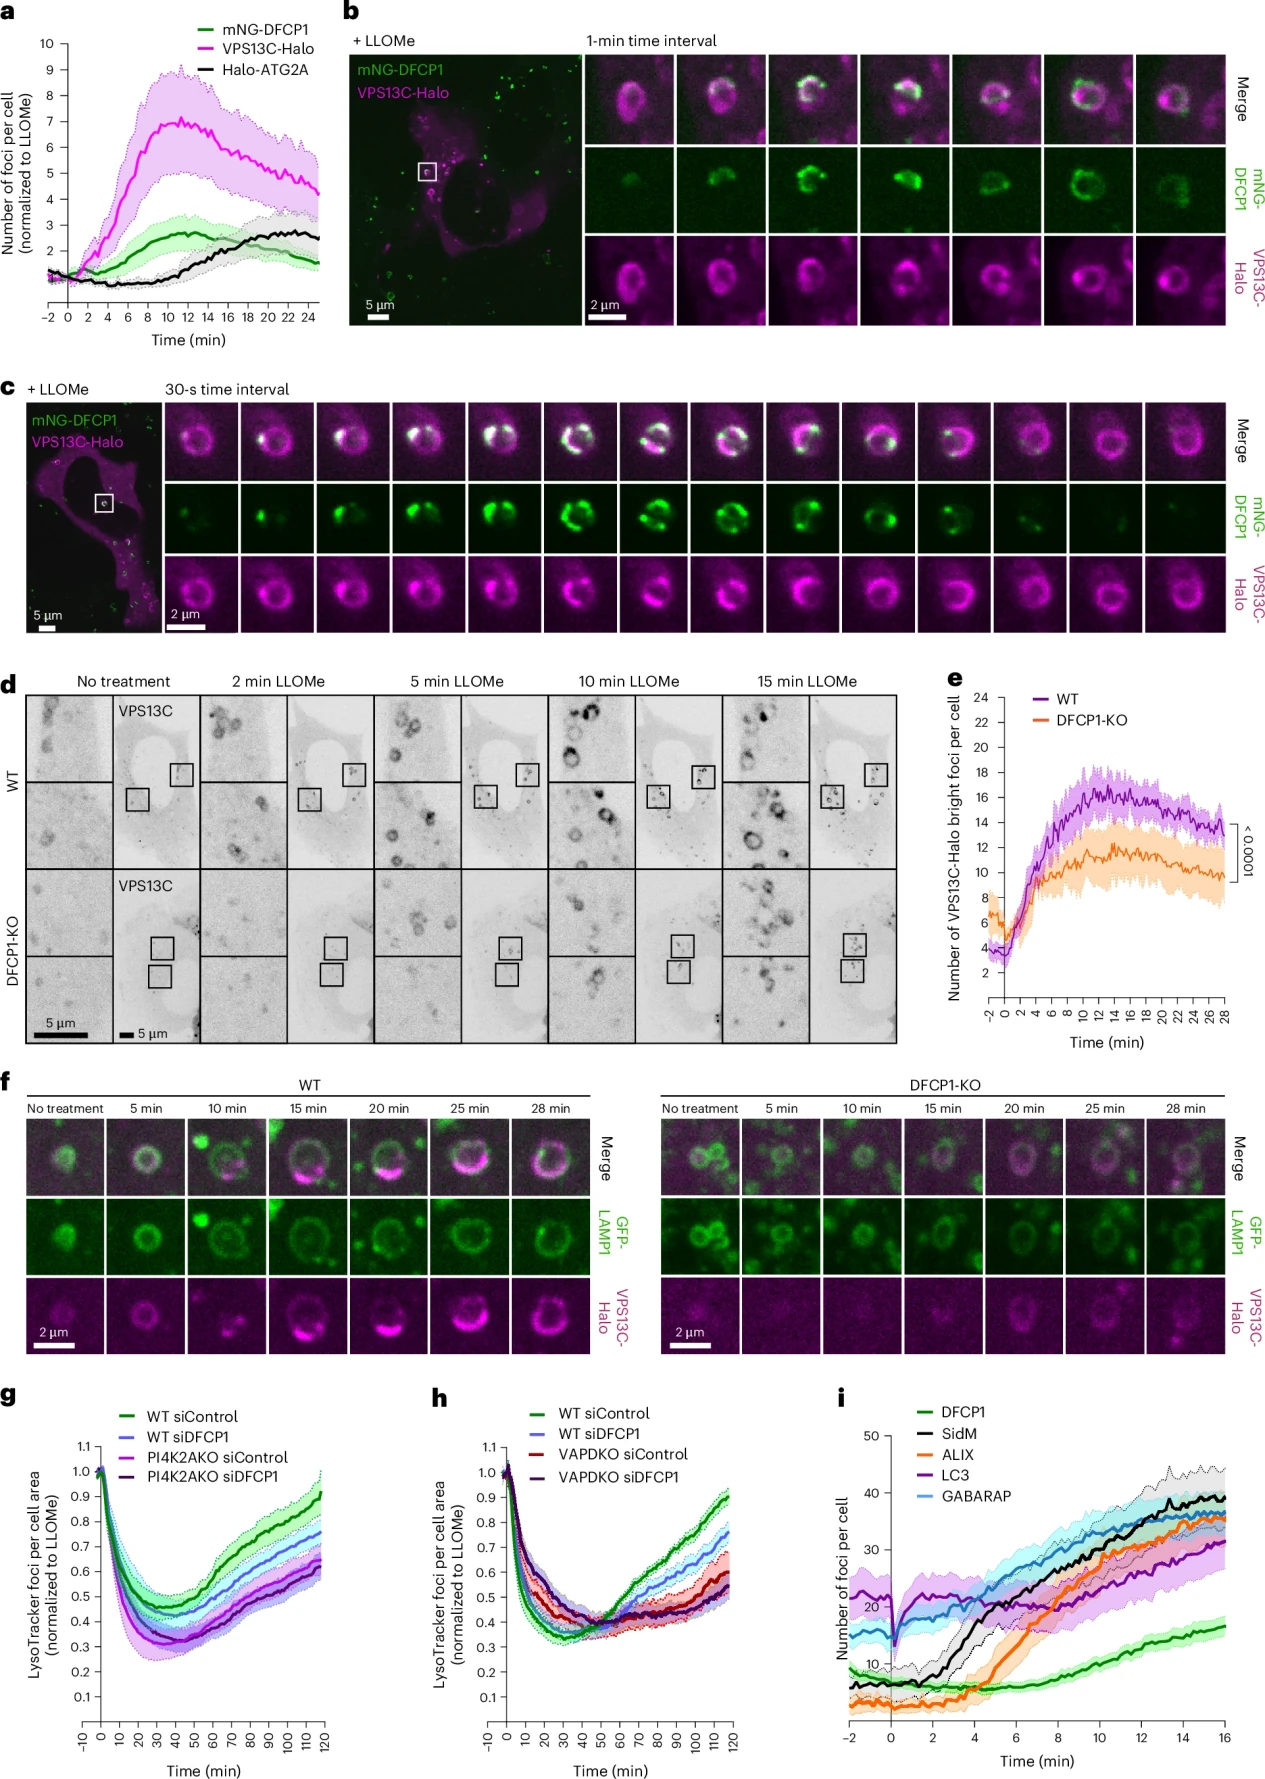
图6. 内质网相关脂质转移机制在溶酶体膜修复过程中与DFCP1协同
7. DFCP1 缺失,溶酶体修复受阻,细胞代偿性升高溶噬水平
DFCP1 敲除时溶酶体直接修补能力下降,破损溶酶体持续累积。Lysoflux 溶噬通量检测发现细胞会启动更强的溶噬通路清除破损溶酶体,以此作为细胞的代偿保护机制。
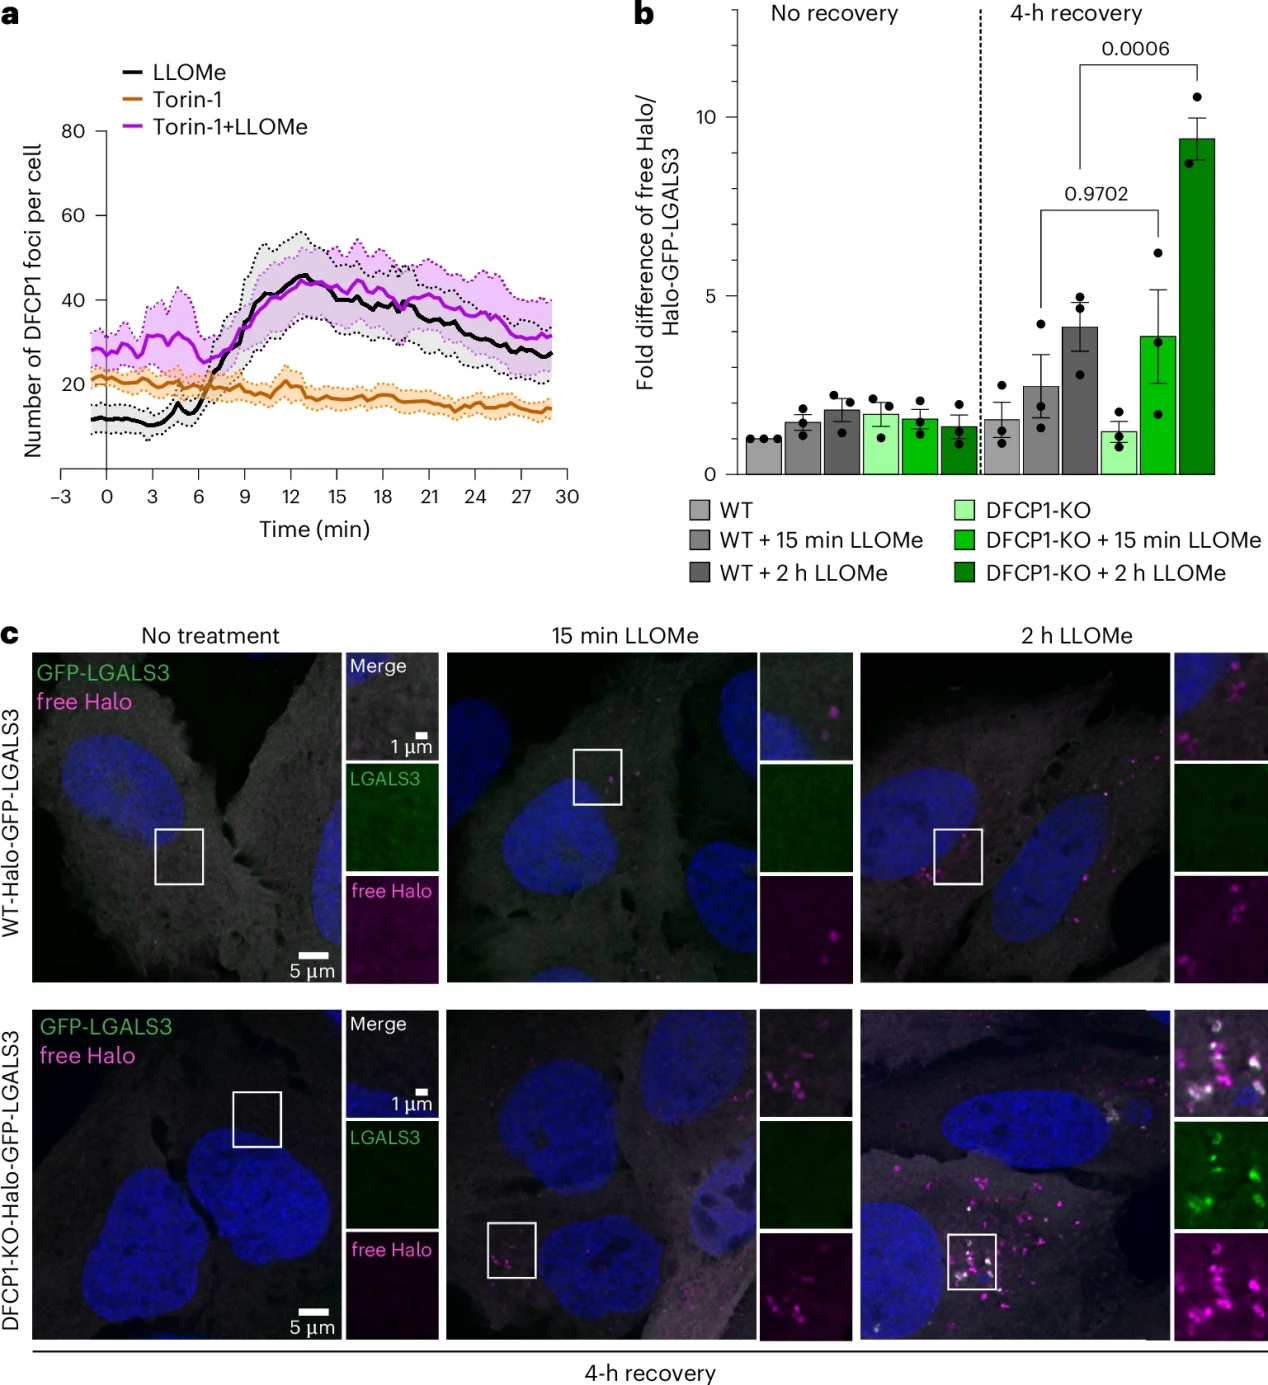
图7 DFCP1 缺失会加剧溶酶体损伤后的溶噬作用
8. DFCP1参与抵抗李斯特菌诱导的液泡膜损伤,并确立Ca²+-ULK1-PIK3C3-PI3P-DFCP1-VPS13C 溶酶体修复工作模型
李斯特菌感染下,DFCP1富集于受损细菌液泡膜;DFCP1敲除会加重液泡损伤,证明通路具备抗感染功能。该通路独立于ESCRT、PI4P通路,内质网形成DFCP1阳性微域,招募脂质转运机器完成溶酶体膜修复。
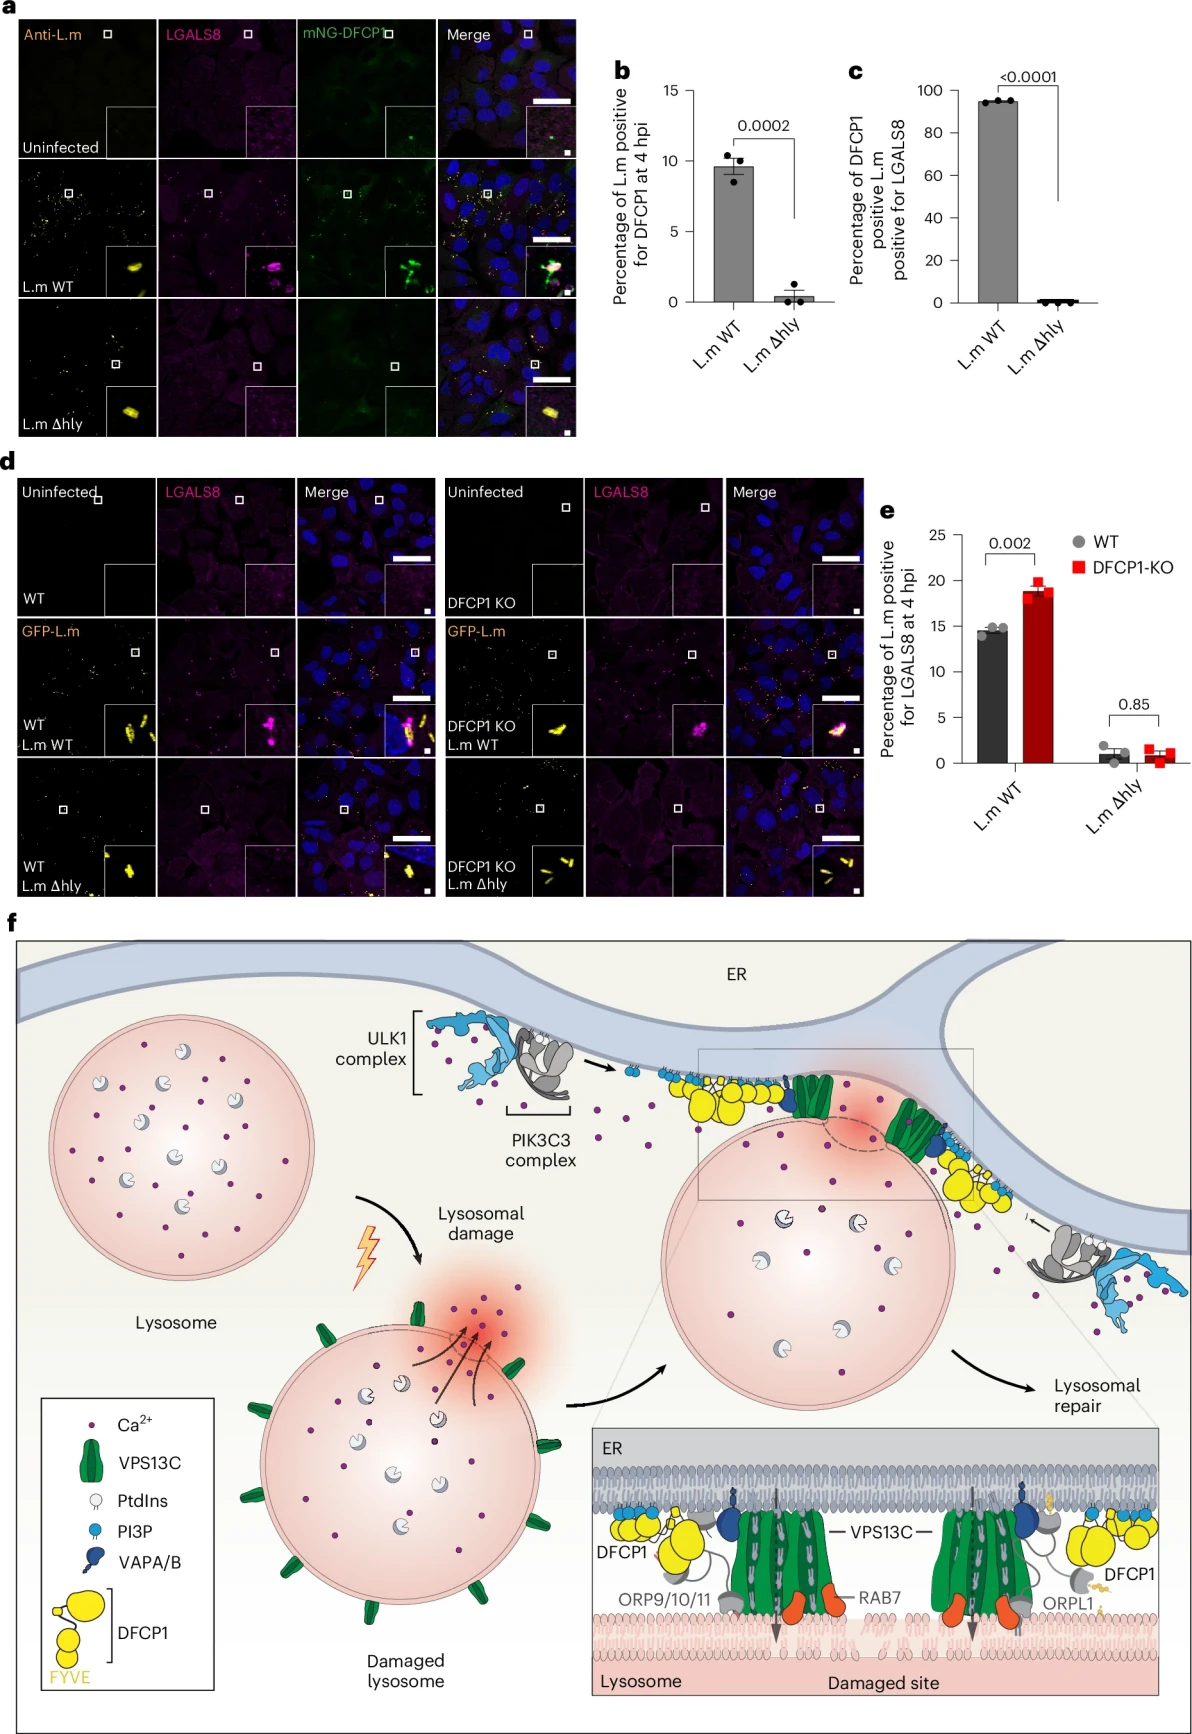
图8. DFCP1 募集于李斯特菌诱导的损伤位点,DFCP1 缺失会造成损伤程度加剧
小源总结
本研究结合多种溶酶体损伤模型、活细胞超分辨显微、基因编辑突变回补与李斯特菌感染病理模型,解析溶酶体损伤应答机制:溶酶体受损释放Ca²+,依次激活ULK1-PIK3C3信号轴生成PI3P,招募DFCP1形成内质网微域,进一步富集脂质转运蛋白VPS13C完成膜修复,明确Ca²+-ULK1-PIK3C3-PI3P-DFCP1-VPS13C分子级联通路。当直接膜修复受阻时,细胞会代偿启动溶噬清除破损溶酶体。该研究揭示含DFCP1的内质网微域是溶酶体膜修复关键平台,完善内质网调控溶酶体稳态的网络,为感染、神经退行性疾病中溶酶体损伤相关病理机制研究提供新思路与理论依据。
源井生物提供的支持
本研究使用的 LAMP1-HaloTag 溶酶体示踪质粒由源井生物提供。该质粒可用于标记溶酶体相关膜结构,结合荧光配体与活细胞成像,帮助研究人员动态观察溶酶体的空间分布及损伤后的形态变化,并结合相关分子标记和功能检测,进一步分析 DFCP1 的募集及溶酶体膜修复过程。
相关服务推荐
源井生物EZ-OE™稳转平台
在溶酶体损伤修复、自噬及细胞器膜接触位点研究中,除动态观察细胞器变化外,还可结合目标基因的稳定表达或功能干预,进一步解析关键分子的作用机制。
源井生物 EZ-OE™ 稳转平台支持基因过表达、基因干扰及 Luc报告基因细胞系定制,可根据研究需求提供相应的细胞系构建与质检服务,为后续机制研究提供实验工具支持。